音声概要
食欲調節に関わるホルモンと中枢神経系
食欲の調節は、複雑なホルモンと神経系のネットワークによって制御されています。この記事では、食欲調節の詳細なメカニズムと、肥満治療への応用について最新の研究知見を交えて解説します。
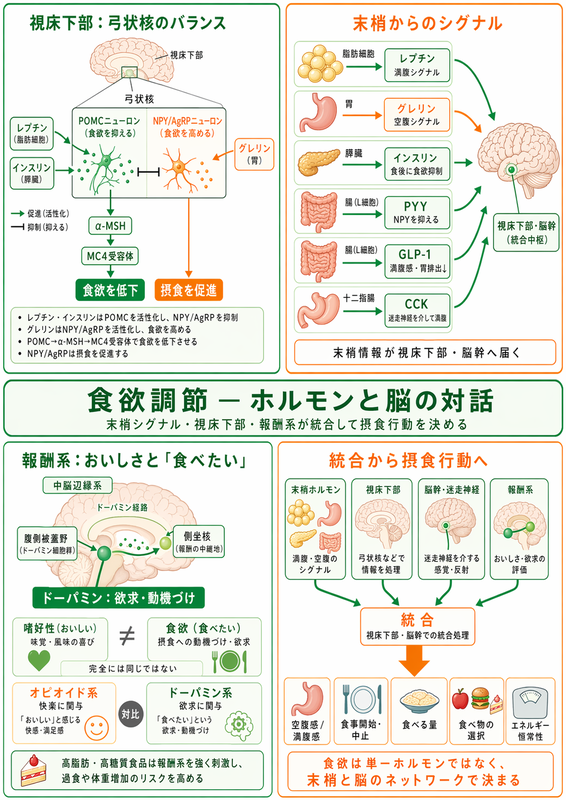
1. ホルモンによる食欲調節
レプチン(Leptin)
レプチンは脂肪細胞から分泌されるホルモンで、視床下部のレプチン受容体(LEP-R)に作用して食欲を抑制します1。脂肪量が増えると血中レプチンも増加し、視床下部に負のフィードバックをかけて摂取を抑え、エネルギー消費を増やす仕組みです。しかし、肥満では慢性的な高レプチン血症にも関わらず食欲抑制が十分に働かない「レプチン抵抗性」の状態になります1。
レプチン抵抗性の原因として、血液脳関門でのレプチン輸送飽和・障害、視床下部でのレプチン受容体の発現低下、シグナル伝達経路の阻害(SOCS3などによるJAK2-STAT3経路の抑制)や、肥満に伴う視床下部炎症・小胞体ストレスの影響などが示唆されています1。このため、外因性にレプチンを投与しても肥満患者では食欲抑制効果が限定的で、減量治療における有効性は低いことが知られています1。
グレリン(Ghrelin)
グレリンは胃から分泌されるペプチドホルモンで強力な食欲増進作用を持ち、「空腹ホルモン」とも呼ばれます。食事の前に血中濃度が上昇し、空腹感と食事開始のシグナルとなり、食後には低下します2。グレリンを注射すると即座に食欲が亢進し、主に食事頻度を増やす形で摂取量が増えることが確認されています2。
短期的な作用に加え、グレリンは長期的にも体重調節に関与し、脂肪の蓄積に応じて分泌が変動する"肥満度シグナル"として働きます2。体重が減少すると代償的にグレリンが上昇し、食欲を強めて体重を元に戻そうとするため、減量後のリバウンド(体重再増加)の一因となります3。
インスリン(Insulin)
インスリンは膵臓から分泌される血糖調節ホルモンですが、中枢神経系でも作用し食欲を抑制する役割があります。インスリン受容体は視床下部(特に弓状核のPOMC/AgRPニューロン)に発現しており、血中インスリンは血液脳関門を通過して脳内に入り、レプチンと同様に摂食抑制性のシグナルとして働きます4。
脳内インスリンはNPY/AgRPなどの摂食促進ニューロンを抑制し、POMC/CARTなどの摂食抑制ニューロンを活性化することで満腹中枢を刺激します5。健常な状態では食後に上昇したインスリンがこのように脳に作用して食欲を減退させ、さらにCCKなど他の満腹シグナルに対する脳の感受性を高めることで適切な食事量で満足感が得られます4。
しかし肥満や2型糖尿病では、インスリン抵抗性が末梢だけでなく脳内でも生じ、インスリンの食欲抑制作用が弱まると考えられます5。その結果、高インスリン状態にも関わらず満腹感が得られにくくなり、過剰な摂取を招く悪循環が生じます5。
GLP-1(Glucagon-like Peptide-1)
GLP-1は小腸下部のL細胞から食事摂取に伴い分泌されるインクレチンホルモンで、膵β細胞からのインスリン分泌促進や胃内容排出の抑制作用に加え、中枢神経系に作用して食欲を抑え満腹感を高めます6。
この作用を利用したGLP-1受容体作動薬(エキセナチド、リラグルチド、セマグルチドなど)が肥満症や2型糖尿病の治療に用いられており、胃内容排出を遅らせ食欲・空腹感を低下させることで摂取カロリーを減少させます6,7。週1回投与のセマグルチド(2.4mg)は約10%前後の平均体重減少を示し7、多くの患者で忍容性は良好です。
PYY、CCKなどの腸管ホルモン
ペプチドYY(PYY)やコレシストキニン(CCK)は消化管から分泌されるホルモンで、ともに満腹感の形成に関与します。PYYは腸のL細胞から分泌される36アミノ酸ペプチドで、特に食事中のタンパク質や脂質に反応して放出されます8。
主に活性型のPYY3-36が血中に出て、視床下部弓状核のNPYニューロン上にあるY2受容体に結合しその活動を抑制することで食欲を低下させます。肥満者では食後のPYY分泌応答が低下していることが報告されており、満腹感の弱さに関与すると考えられます8。
CCKは十二指腸のI細胞から主に食事中の脂肪やタンパク質に応答して分泌されるホルモンで、迷走神経のCCK受容体を介して延髄の孤束核を刺激し、さらに視床下部に投射して満腹中枢を活性化します4。CCKは食事の途中で「お腹いっぱい」という感覚(摂食の中止シグナル)を生じさせる典型的な短期性の満腹シグナルです4。
2. 中枢神経系による食欲調節
視床下部の役割
視床下部は食欲・エネルギー恒常性を統括する中枢で、中でも弓状核(Arcuate nucleus; ARC)には拮抗的に働く2種類の神経細胞群が存在します。一つはAgRP/NPYニューロンで、神経ペプチドY(NPY)とAgRP(Agouti-related peptide)を産生し、空腹シグナルを発して摂食を促進する役割があります9。
もう一つはPOMC/CARTニューロンで、プロオピオメラノコルチン(POMC)由来のα-MSHやCARTを産生し、満腹シグナルを発して摂食を抑制します9。これらのニューロンは体内のエネルギー状態に応じて活性が変化し、末梢からのホルモン(グレリン、レプチン、インスリンなど)の情報を統合して働きが制御されます9。
空腹時には胃からのグレリンがNPY/AgRPニューロンを活性化し、視床下部外側野や室傍核への投射を介して食欲を増進します。一方、脂肪細胞由来のレプチンや膵インスリンはARCに作用してNPY/AgRPニューロンを抑制するとともにPOMCニューロンを刺激し、α-MSHの放出を促して視床下部室傍核(PVN)のメラノコルチン4受容体(MC4R)を活性化することで摂食抑制効果を発揮します9。
報酬系の関与
摂食行動には、視床下部による恒常性維持機構に加えて、食の「快楽・報酬」を司る脳内報酬系も深く関与します。中脳の腹側被蓋野(VTA)から大脳基底核の側坐核(NAc)に至るドーパミン作動性経路は、美味しい食べ物に対する"欲求"や動機付け(いわゆる「食べたい」という衝動)を制御しており、食事がエネルギー的に不要な状況でも美味しさによって摂食が引き起こされる現象の背景となります10。
ヒト肥満者では線条体におけるドーパミンD2受容体の可用性が低下しており、BMIに比例してD2受容体が減少することがPET研究で示されています11。このドーパミン機能低下により報酬回路の刺激が不足し、それを補うために過食が継続・慢性化する一因となると考えられます11。
さらにセロトニン(5-HT)も食欲制御に関与し、特に5-HT2C受容体は摂食抑制に重要です。視床下部POMCニューロンに存在する5-HT2C受容体が刺激されるとα-MSH放出が促進され食欲が低下します12。
一方、脳内オピオイド系は食物の「快楽」(liking)に関与し、特にμオピオイド受容体の活性化は高脂肪・高糖質の美味しい食べ物の摂取を促進します13。側坐核にμオピオイド受容体作動薬を投与すると空腹でなくても摂食が誘発され、その効果は摂取する食物の美味しさに依存します13。
ストレスとの関連(HPA軸とコルチゾール)
心理的ストレスも食欲に影響します。ストレス下では視床下部-下垂体-副腎軸(HPA軸)が活性化し、視床下部PVNからコルチコトロピン放出ホルモン(CRH)が分泌されます。CRHはストレス時の生存優先応答として摂食を抑制する作用があり、NPY/AgRPニューロンを介した摂食亢進シグナルを遮断します14,15。
このため急性ストレス下では一時的に食欲が減退する傾向があります。しかしストレスが持続すると、最終的に分泌される糖質コルチコイド(ヒトではコルチゾール)の慢性的高値により、状況が逆転します。コルチゾールはCRH分泌を負のフィードバックで抑制するため、CRHによる摂食抑制が解消されるうえ、非ストレス時にはむしろorexigenic(摂食促進的)に作用するとされています16。
さらにコルチゾール自体が「高カロリー食を摂取してエネルギーを蓄えよ」というシグナルとなり、特に脂肪や糖分が多い高味食品(いわゆるジャンクフード)への欲求を高めます17。慢性的なストレスにさらされた人は実際に高脂肪・高糖質食品を過食しやすく、ストレス太り(内臓脂肪蓄積)の一因となります。
3. ホルモンと神経ネットワークの相互作用
ホルモンと神経伝達のクロストーク
摂食調節においては、末梢ホルモンと中枢神経ネットワークが双方向に情報交換しています。視床下部ARCの摂食制御ニューロンは末梢から届く様々なホルモン信号を受容し、その情報に応じて神経伝達物質を放出します4。
レプチンやインスリンといった満腹ホルモンは血中を介して脳内に入り、ARCのPOMCニューロンを活性化すると同時にAgRP/NPYニューロンを抑制することで、脳内ネットワークに「エネルギー充足」を伝えます4。逆にグレリンなど空腹ホルモンは摂食促進ニューロンを直接刺激するとともに、中脳辺縁系(報酬系)のドーパミン神経にも作用して空腹時の摂食行動を強力に駆動します2。
PYYやCCKなどの腸管ホルモンは迷走神経を介して延髄の孤束核(NTS)や視床下部に信号を送り、満腹情報として統合されます。この情報はさらに大脳皮質や報酬系ともやりとりされ、最終的な「食べる・食べない」の意思決定に反映されます。
エネルギーバランスの調節
上述のような複雑な機構により、私たちの体は長期的なエネルギーバランスが維持されるよう調節されています。体脂肪が増加すればレプチンやインスリンが脳を刺激して摂食が抑えられ、逆に体脂肪が減少すればNPY/AgRP経路が活性化して摂食が促進されるという具合に、体重は生理的な範囲内に維持されようとします4。
例えばNPY/AgRPニューロンが活性化すると摂食行動が亢進するだけでなく交感神経活動が低下しエネルギー消費が抑制されます。一方でPOMCニューロンが活性化すると摂食が抑えられ、副交感神経より交感神経が優位になることで代謝亢進や熱産生が促されます。このように摂食・代謝双方に影響を与える神経ペプチドを介してエネルギー収支のバランスが取られています4。
4. 肥満・疾患との関連
レプチン抵抗性の病態
肥満に伴うレプチン抵抗性では、慢性的高レプチン状態にも関わらず視床下部がレプチン刺激に反応しづらくなっています。その機序として、(1)レプチンの血液脳関門通過障害:肥満では血中レプチン濃度が高くても脳脊髄液中への輸送が飽和し視床下部に十分届かない1、(2)視床下部でのレプチン受容体(Ob-Rb)発現低下:過剰なレプチン刺激により受容体数が減少する可能性1、(3)シグナル伝達の障害:レプチン受容体下流のJAK2-STAT3経路がSOCS3やPTP1Bなどの阻害因子によりブレーキがかかる、あるいは高脂肪食による小胞体ストレスや炎症性経路の活性化がレプチンシグナルを遮断する1、といった多様な要因が示唆されています。
興味深いことに、レプチン抵抗性は全ての作用に及ぶわけではなく、食欲抑制作用のみ低下して交感神経亢進作用は保たれる「選択的レプチン抵抗性」の概念も報告されています1。このため一般的な肥満患者では外因性レプチン投与による顕著な減量効果は得られず、レプチン単独療法は効果が限定的です1。
インスリン抵抗性と食欲異常
インスリン抵抗性は肥満・2型糖尿病における中心的病態であり、これが中枢の食欲制御にも影響します。肥満では高インスリン血症が持続しますが、本来満腹シグナルであるはずのインスリンへの脳の反応性が低下するため、食欲抑制が不十分になります5。
その結果、食後高インスリン状態でも空腹感が残存し、過剰摂取を続けてしまう悪循環が生じます。実際、内臓脂肪型肥満者では同じ食事量でも満腹感の得られにくさが報告されており4、中枢性インスリン抵抗性が過食の一因と考えられます。
神経伝達異常による摂食障害
むちゃ食い障害(BED)では報酬系の過敏性が示唆されており、食べ物に対する快楽や動機づけが過剰に働きすぎる素因があると考えられます18。実際、ドーパミンD2受容体遺伝子の多型とBEDの関連を調べた研究では、報酬感受性が高い遺伝型を持つ人で過食傾向が強いことが示されています18,19。
一方、神経性無食欲症(AN)では、食物摂取に対する報酬系の反応異常が示唆されます。食べても快感が得られず、むしろ不安や嫌悪感が生じるために摂食行動を持続できなくなるという仮説です。AN患者では脳脊髄液中のドーパミン代謝産物が低下しセロトニン代謝産物が上昇している報告があり、セロトニン過剰状態は不安傾向と食欲低下に結びつく可能性があります20。
マウスを用いた最近の研究では、中脳ドーパミン神経の活動レベルによって摂食行動が変化することが示されました。ドーパミン神経の活動が低水準(D2受容体優位の刺激)では過食が引き起こされる一方、活動が高水準(D1受容体を介しRaphe核のセロトニン神経を強く刺激)になると摂食が著しく抑制され無食欲状態になります20,21。
5. 食欲調節を標的とした治療戦略
GLP-1受容体作動薬
GLP-1アナログ製剤は肥満症治療において近年中心的な役割を担っています。代表的なリラグルチド(GLP-1アナログ、商品名サクセンダ®)は1日1回皮下注射で約5〜8%の体重減少効果を示し、肥満症治療薬として承認されています。
さらに週1回投与の高力価製剤セマグルチド(商品名ウゴービ®)は平均10%以上の体重減少を示し、従来の薬物療法を大きく上回る有効性が報告されました7。GLP-1受容体作動薬は視床下部や脳幹の受容体を刺激して食欲と空腹感を低下させ、胃内容排出を遅延させることで少量の食事でも長時間満腹感を維持させます6,7。
その結果、摂取カロリーを大幅に削減し、内臓脂肪の減少やインスリン感受性の改善をもたらします。副次的に血糖コントロールや脂質プロファイル、血圧など心血管リスク因子も改善するため、肥満を伴う2型糖尿病患者に特に有用です。主な副作用は悪心・嘔吐・下痢などの消化器症状ですが、多くは軽度で投与継続により改善します6。
レプチン療法
生理的には強力な食欲抑制ホルモンであるレプチンの補充療法は、一見理想的な肥満症治療に思われますが、一般的な肥満患者では前述のレプチン抵抗性のため効果が限定的です1。実際、過去の臨床試験でもレプチン投与単独では有意な減量は得られませんでした。
一方、先天性レプチン欠損症や重度の脂肪萎縮症(レプチン欠乏を伴う病態)では、メトレレプチン(レプチン製剤)の投与により食欲が正常化し著明な体重減少・代謝改善が得られます22。これらは特殊な例であり、肥満症治療へのレプチン療法応用には脳のレプチン感受性を如何に高めるかが鍵となります。
現在検討されている戦略としては、レプチンと他ホルモンの併用療法があります。例えばレプチンと膵β細胞ホルモンのアミリンを併用すると相乗的に体重が減少することが報告されており22、ヒト臨床試験でもレプチン単独より有意な減量効果が示されています。
神経系ターゲットの薬物療法
視床下部や報酬系の神経伝達を調節する薬物療法も肥満・過食の治療に利用されています。現在米国で承認されている中枢性食欲抑制薬には、フェンテルミン/トピラマート合剤(商品名キュシミア®)やナルトレキソン/ブプロピオン合剤(商品名コントラーブ®)があります。
フェンテルミンは交感神経を刺激してノルアドレナリン放出を増加させることで満腹中枢を刺激する古典的食欲抑制薬です。トピラマートは抗てんかん薬ですが、中枢神経の抑制性神経伝達を強め食習慣(高カロリー食嗜好や衝動的摂食)を改善する作用があると考えられています。
ナルトレキソン/ブプロピオン合剤は、視床下部のPOMCニューロンを活性化する抗うつ薬(ドーパミン・ノルアドレナリン再取り込み阻害薬)と、POMCニューロンから放出される自己抑制性のβエンドルフィンを遮断するオピオイド拮抗薬の組み合わせで、満腹シグナルを増強・持続させる設計です8。臨床試験では約5–7%の体重減少効果が示されています。
行動療法と心理療法
薬物療法と並んで、食欲や摂食行動に働きかける行動・心理療法も重要です。認知行動療法(CBT)は、患者の食行動のパターンや誘因を分析し、不適切な食習慣や認知(考え方)を修正するアプローチです。例えばストレスや感情の乱れから過食に至る悪循環がある場合、そのトリガーとなる状況への対処法や、食べ物以外の報酬で代替する方法を訓練します23。
マインドフルネスやマインドフル・イーティング(Mindful Eating)も摂食行動の改善に有用な手法です。マインドフルネス瞑想は、呼吸や感覚に意識を集中させる訓練を通じてストレス反応や衝動的行動を和らげるもので、ドーパミンなど報酬系神経の過剰な反応を安定化させる効果が報告されています24。
この手法を食行動に応用したマインドフル・イーティングでは、一口ごとの味や食感、自分の満腹度に注意を払いながらゆっくり食事をすることで、過食や早食いを防ぎます。実際、マインドフルネスに基づく介入により甘い物の摂取頻度が減少し、食生活の改善と血糖値の低下がみられた研究があります25。
6. 最新の研究と今後の展望
腸内マイクロバイオームと食欲
近年、腸内細菌叢(マイクロバイオーム)と食欲調節の関連が注目されています。腸内細菌は食物繊維から酢酸・プロピオン酸・酪酸などの短鎖脂肪酸(SCFA)を産生し、これが腸管ホルモン分泌や迷走神経を介して満腹中枢に作用することが分かってきました26。
例えばプロピオン酸は大腸L細胞からのPYYやGLP-1分泌を刺激し、満腹感維持に寄与します。また腸内細菌はトリプトファン代謝やGABA産生などを通じて腸神経系を調整し、ひいては脳内の食欲や情動の中枢にも影響を及ぼす「腸脳相関」が存在します26。
遺伝的要因
食欲の強さや肥満のなりやすさには遺伝的要因も関与します。代表的なのがFTO遺伝子とMC4R遺伝子です。FTO遺伝子のリスク変異を持つ人は持たない人に比べて肥満になりやすく、これはFTOが胃から分泌されるグレリンの調節に関与し、リスクアレルを持つとグレリン値が高く空腹感を感じやすいためと考えられます27。
一方、視床下部のメラノコルチン4受容体をコードするMC4R遺伝子の変異(機能喪失変異)は幼少期からの高度肥満を引き起こす単一遺伝子性疾患として知られます。MC4R変異を持つ患者は強い過食と早発肥満を呈し、摂食抑制シグナル(α-MSH)が受容体に伝わらないため常に飢餓状態に陥ると考えられています28。
将来的な治療ターゲット
最後に、近年の研究が示す将来的な食欲調節の標的について言及します。一つは新規ホルモン経路の活用です。例えばGDF15(成長分化因子15)はストレスや運動で増加するサイトカイン様ホルモンで、延髄の受容体GFRALを介し摂食抑制作用を示すことが明らかになっています3。
また既存ホルモンの組み合わせ強化では、GLP-1とGIPの二重受容体作動薬であるチルゼパチドが2022年に2型糖尿病治療薬として承認され、肥満症に対しても大きな体重減少効果(約15〜20%の減量)を示しています29。さらにGLP-1・GIP・グルカゴンの三重作動薬であるレタルトルチド(開発中)は、48週間で平均-24.2%という前例のない大幅減量を達成し話題となりました29,30。
中枢神経への新規アプローチでは、脳深部刺激療法(DBS)や経頭蓋磁気刺激(TMS)などの神経調節法が研究されています。難治性肥満患者を対象に、視床下部外側野や側坐核など摂食に関わる脳部位に電極を留置し慢性的に刺激するDBSの試験が行われており、少数例ながら過食エピソードの減少や体重減少が報告されています31。
ゲノム編集と遺伝子治療も将来の肥満治療の選択肢として注目されています。マウスを用いた基礎研究では、CRISPR-Cas9による遺伝子活性化技術(CRISPRa)を使って視床下部のSIM1遺伝子やMC4R遺伝子の発現量を増加させたところ、顕著な摂食量の減少と肥満の改善が得られました32。
総じて、今後はホルモン療法・神経調節・遺伝子操作・腸内環境調整など多角的な手段を組み合わせ、個別化医療の観点から患者一人ひとりの食欲調節機構に合わせたオーダーメイド治療が展望されています。肥満や摂食障害の病態解明がさらに進めば、新たな治療ターゲットが次々と見出され、より効果的な介入が可能になるでしょう。
参考文献
- [要出典] Frontiers | Leptin and Obesity: Role and Clinical Implication. Front Endocrinol. 2021.
- [要出典] Cummings DE, et al. Ghrelin and the short- and long-term regulation of appetite and body weight. Physiol Behav. 2006;89(1):71-84.
- [要出典] Yu Q, et al. Appetite-controlling molecule could prevent 'rebound' weight gain after dieting. eLife. 2021.
- [要出典] Schwartz MW, et al. Central Control of Body Weight and Appetite. J Clin Endocrinol Metab. 2008;93(11):S37-S50.
- [要出典] Duret L, et al. Could Insulin Be a Better Regulator of Appetite/Satiety Balance and Body Weight Maintenance in Response to Glucose Exposure Compared to Sucrose Substitutes? Med Sci. 2024;12(2):29.
- [要出典] Müller TD, et al. Weight Loss and Maintenance Related to the Mechanism of Action of Glucagon-Like Peptide 1 Receptor Agonists. Front Endocrinol. 2021;12:706329.
- [要出典] Wilding JPH, et al. Once-Weekly Semaglutide in Adults with Overweight or Obesity. N Engl J Med. 2021;384:989-1002.
- [要出典] Batterham RL, et al. Gut Hormones and Appetite Control: A Focus on PYY and GLP-1 as Therapeutic Targets in Obesity. Gut and Liver. 2012;6(1):10-20.
- [要出典] Cavalera M, et al. AgRP/NPY and POMC neurons in the arcuate nucleus and their potential role in treatment of obesity. Endocrine. 2022;75:353-366.
- [要出典] Marzullo D, et al. Dopaminergic Control of the Feeding Circuit. Front Biol. 2021;9:613511.
- [要出典] Wang GJ, et al. Brain dopamine and obesity. Lancet. 2001;357(9253):354-7.
- [要出典] Taylor JR, et al. Lorcaserin. Prescriber. 2018;29(4):33-34.
- [要出典] Le Merrer J, et al. Reward Processing by the Opioid System in the Brain. Physiol Rev. 2009;89(4):1379-1412.
- [要出典] Sapolsky RM, et al. Neurohormonal Regulation of Appetite and its Relationship with Stress: A Mini Literature Review. Cureus. 2018;10(7):e3032.
- [要出典] Sominsky L, et al. Eating behavior and stress: a pathway to obesity. Front Psychol. 2014;5:434.
- [要出典] Spencer SJ, et al. The glucocorticoid contribution to obesity. Stress. 2011;14(3):233-46.
- [要出典] Adam TC, et al. Stress, eating and the reward system. Physiol Behav. 2007;91(4):449-58.
- [要出典] Davis C, et al. Binge eating disorder and the dopamine D2 receptor: genotypes and sub-phenotypes. Prog Neuropsychopharmacol Biol Psychiatry. 2012;38(2):328-35.
- [要出典] Bello NT, et al. Food addiction and obesity: dopamine deficiency or oversensitivity to food cues? Neuroscience. 2016;327:1-10.
- [要出典] Gupta A, et al. The neurobiology of anorexia. Science Connected Magazine. 2022.
- [要出典] Kaye WH, et al. New insights into symptoms and neurocircuit function of anorexia nervosa. Nat Rev Neurosci. 2009;10(8):573-84.
- [要出典] Friedman JM, et al. Leptin in Leanness and Obesity: JACC State-of-the-Art Review. J Am Coll Cardiol. 2021;78(12):1259-1275.
- [要出典] Tanco S, et al. Reducing emotional eating through mindfulness-based cognitive behavior therapy training. Ernahrungs Umschau. 2022;10:M540-M545.
- [要出典] Purohit MP, et al. A Literature Review on Holistic Well-Being and Dopamine Fasting. Cureus. 2023;15(5):e39398.
- [要出典] Mason AE, et al. Effects of a mindfulness-based intervention on mindful eating, sweets consumption, and fasting glucose levels in obese adults. Ann Behav Med. 2016;50(1):23-36.
- [要出典] Dinan TG, et al. Feeding melancholy: a review of the interactions between diet, gut microbiota, and mental health. Front Neurosci. 2015;9:395.
- [要出典] Karra E, et al. A link between FTO, ghrelin, and impaired brain food-cue responsivity. J Clin Invest. 2013;123(8):3539-51.
- [要出典] Poitou C, et al. Melanocortin 4 receptor (MC4R) gene variants in children and adolescents with severe obesity. J Pediatr Endocrinol Metab. 2020;33(6):749-756.
- [要出典] Rosenstock J, et al. How should we think about the unprecedented weight loss efficacy of incretin-mimetic drugs? J Clin Invest. 2023;133(16):e174597.
- [要出典] Luo SX, et al. Weight loss efficacy of the novel tirzepatide formulation in patients with obesity. JAMA. 2022;328(13):1335-1347.
- [要出典] Taghva A, et al. Effectiveness of Deep Brain Stimulation in Reducing Body Mass Index in People with Obesity. Stereotact Funct Neurosurg. 2022;100(2):75-85.
- [要出典] Wilson JL, et al. "A" is for Amplify: CRISPRa Used to Treat Obesity Without Editing DNA. BioSpace. 2022.
