「日本人はどこから来たのか」——この問いは、古くから考古学・言語学・形態人類学の分野で議論されてきました。しかし近年、古代DNA解析と大規模ゲノム研究の急速な進歩により、その答えが大きく書き換えられつつあります。
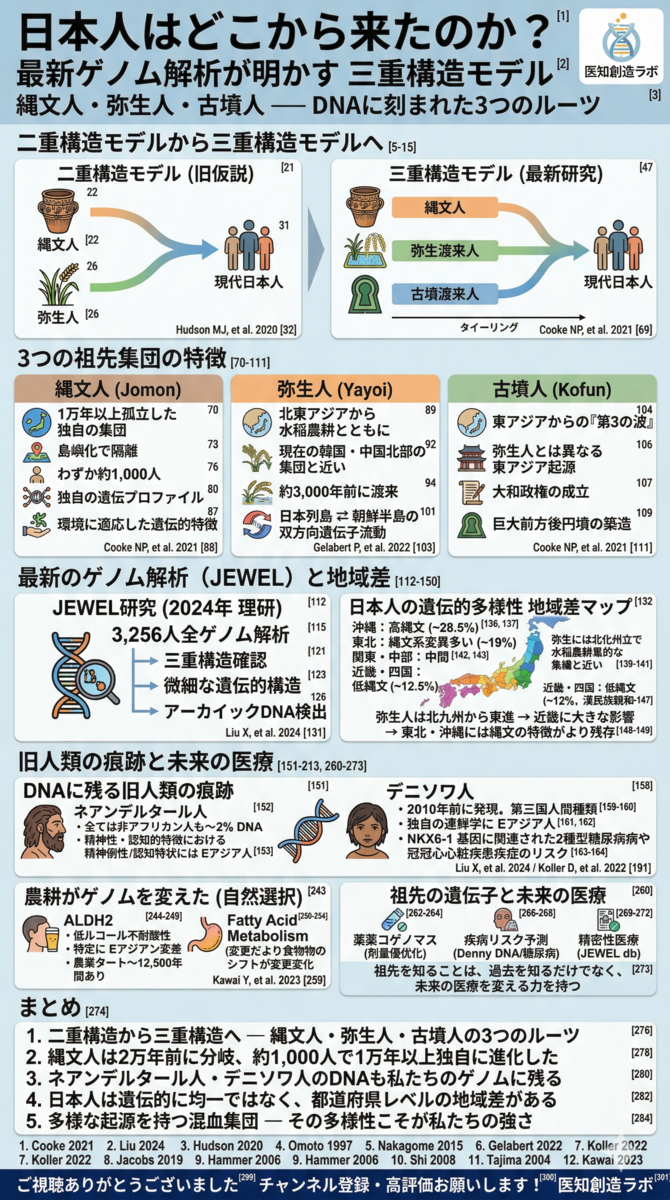
かつての定説は「縄文人と弥生人の混血」というシンプルなモデルでした。ところが2021年、古代人骨のゲノム解析から「三重構造モデル」が提唱され、日本人の成り立ちはもっと複雑であることが明らかになりました1。さらに2024年には3,000人以上の現代日本人の全ゲノム解析がこのモデルを裏付けています2。
本記事では、最新の遺伝学研究を一般の方にもわかりやすく解説し、私たちのDNAに刻まれた壮大な物語をたどります。
目次
日本人の起源研究 — 定説はどう変わってきたか
埴原和郎の「二重構造モデル」とは
1991年、形態人類学者の埴原和郎は、頭骨と歯の形態データに基づいて「二重構造モデル」を提唱しました3,4。このモデルの骨子は次のとおりです。
- 第1層(縄文人):旧石器時代に東南アジア方面から日本列島に渡来し、1万年以上にわたり狩猟採集生活を営んだ先住集団
- 第2層(弥生人):約2,300年前に朝鮮半島を経由して水稲農耕とともに渡来した北東アジア起源の集団
この2つの集団が混血し、現代日本人が形成されたというのが基本的な枠組みです。アイヌと琉球の人々は縄文人の遺伝的特徴をより強く残し、本土日本人は弥生人の影響が大きい——このモデルは30年近く広く受け入れられてきました3。
モデルの限界と新たな疑問
二重構造モデルは多くの遺伝学的研究で部分的に支持されてきました4,5。しかし、次のような疑問も残されていました。
- 弥生時代から古墳時代にかけての急激な文化変容(国家形成、文字の導入、巨大古墳の築造)を、単一の渡来の波で説明できるのか?
- 古墳時代人の形態が弥生人とも異なるという形態学的証拠はどう解釈するのか?
- 縄文人の起源は本当に東南アジアなのか?(遺伝学的にはむしろ北東アジアの基層集団からの分岐が示唆される4)
これらの疑問に答えるには、実際に古代人骨からDNAを抽出し、直接ゲノムを読み解くパレオゲノミクス(古代ゲノム学)の進歩を待つ必要がありました。
三重構造モデル — 縄文人・弥生人・古墳人の3つの祖先
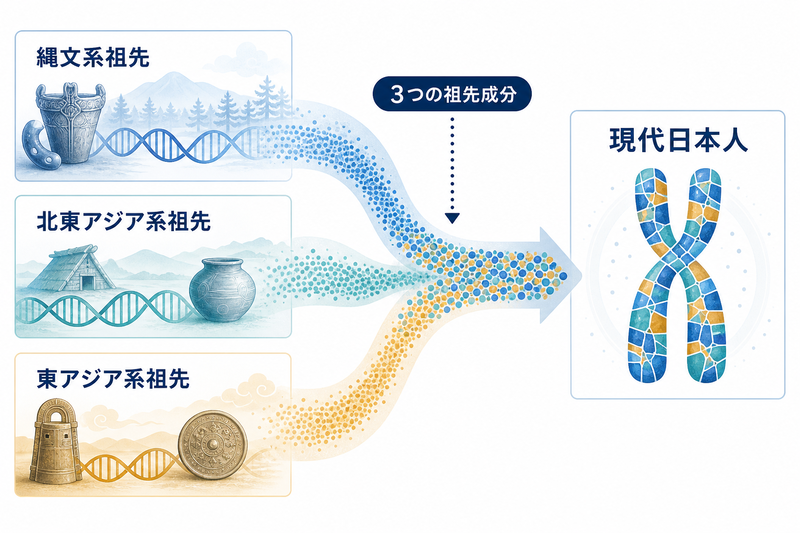
現代日本人は、①縄文人(2万〜1.5万年前に大陸から分岐した先住集団)、②弥生時代の渡来人(北東アジア起源)、③古墳時代の渡来人(東アジア起源)——の3つの祖先集団の混血により形成された1。
縄文人 — 2万年前に分岐した孤立集団
2021年、金沢大学のGakuhariらとTrinity College Dublinの国際共同研究チームは、日本列島の遺跡から出土した縄文人9個体・古墳人3個体を含む12個体の古代ゲノムを解析し、画期的な成果を発表しました1。
この研究で明らかになった縄文人の遺伝学的特徴は、驚くべきものでした。
- 大陸の集団からの分岐時期は2万〜1万5,000年前——ちょうど最終氷期の終わりに海面が上昇し、日本列島が大陸から切り離された時期と一致
- 有効集団サイズはわずか約1,000人で、数千年にわたりこの小さな規模を維持
- 大陸の他のどの集団とも大きく異なる、独自の遺伝的プロファイルを持つ
つまり縄文人は、海面上昇による日本列島の島嶼化を機に大陸から遺伝的に隔離され、1万年以上にわたり独自の進化を遂げた集団だったのです。
弥生人 — 北東アジアからの渡来集団
約3,000年前、水稲農耕とともに大陸から渡来した集団が弥生文化を形成しました。ゲノム解析から、この渡来集団の遺伝的起源は北東アジアにあることが確認されています1。
東邦大学などの研究グループは、山口県・土井ヶ浜遺跡から出土した弥生時代人骨のゲノム解析を行い、渡来人の具体的な遺伝的プロファイルを報告しています6。弥生人は、現在の韓国や中国北部の集団と遺伝的に近い特徴を持っていました。
興味深いことに、韓国・金海市の三国時代(4〜5世紀)の古代ゲノムにも縄文関連の祖先成分が検出されています7。これは、弥生時代の人の移動が一方向ではなく、日本列島と朝鮮半島の間で双方向的な遺伝子流動があったことを示唆しています。
古墳人 — 東アジアからの第3の波
Cookeらの2021年の研究で最も注目すべき発見は、古墳時代(3世紀後半〜7世紀)に第3の祖先集団が日本列島に流入したという知見です1。
この「第3の波」は、弥生人とは異なる東アジア起源の遺伝的成分を持っています。古墳時代は、大和政権の成立、文字・仏教の導入、巨大前方後円墳の築造など、日本史上最も大きな文化的転換が起こった時代です。遺伝学は、この文化変容の背景に新たな集団の流入があったことを裏付けました。
重要なのは、現代の本土日本人のゲノムが、この3つの祖先成分すべてを含んでいるという点です。つまり、古墳時代に形成された三重構造は、1,500年以上経った今も私たちのDNAに刻まれているのです。
3,000人の全ゲノム解析が明かしたこと — 2024年理研の大規模研究
研究の規模と手法
2024年、理化学研究所の寺尾知可史チームリーダーらは、JEWEL(Japanese Encyclopedia of Whole-genome/Exome sequencing Library)プロジェクトの成果を発表しました2。これは、バイオバンク・ジャパンに登録された3,256人の日本人について、高深度の全ゲノム配列を決定した大規模研究です。
これまでのマイクロアレイ(遺伝子チップ)を使った研究とは異なり、全ゲノム配列決定では稀少な遺伝的変異まで捉えることができます。この「解像度」の向上が、従来見えなかった微細な遺伝的構造の発見につながりました。
3つの祖先系統の比率
JEWELデータの集団遺伝学的解析により、現代日本人のゲノムは3つの祖先成分に分解できることが確認されました2。これはCookeらの三重構造モデルを、現代人の大規模データで独立に裏付けた重要な成果です。
本州の日本人では平均的に、ゲノムの約10%が縄文人由来、残りの約90%が弥生時代以降の渡来系に由来すると推定されています。ただし、この比率には大きな地域差があります。
都道府県レベルの遺伝的多様性
JEWELの解析で最も興味深い発見のひとつが、日本人の遺伝的多様性は地域によって大きく異なるという点です2。
| 地域 | 縄文祖先の比率 | 特徴 |
| 沖縄 | 約28.5%(最高) | 縄文人との遺伝的親和性が最も高い |
| 東北(青森・秋田・岩手など) | 約19% | 縄文人由来変異を比較的多く保有 |
| 関東・中部 | 中間 | 日本の平均的な遺伝構成 |
| 近畿・四国 | 約12%(低い) | 漢民族と遺伝的親和性が高い |
この地域差は、弥生時代以降の渡来人が北九州から東進し、近畿地方に大きな影響を与えた一方で、東北や沖縄には縄文人の遺伝的特徴がより多く残されたことを反映しています。島根県なども縄文系の変異を比較的多く保有しており、地理的な隔離が遺伝構成に影響したことがうかがえます。
日本人のDNAに残る旧人類の痕跡
ネアンデルタール人由来の遺伝子
現生人類がアフリカを出た後、ヨーロッパや西アジアに住んでいたネアンデルタール人と混血したことは、今やよく知られた事実です。その結果、アフリカ以外の現代人のゲノムには約2%のネアンデルタール人DNAが含まれています。
日本人も例外ではありません。2024年のJEWEL研究では、日本人のゲノムに含まれるネアンデルタール人由来のセグメントが詳細に同定されました2。Kollerらの2022年の研究では、ネアンデルタール由来のアレルが東アジア人において精神・認知形質と関連することが報告されています8。
デニソワ人由来の遺伝子と疾患リスク
デニソワ人は、2010年にシベリアのデニソワ洞窟で発見された指の骨から存在が明らかになった「第3の人類」です。ネアンデルタール人の姉妹グループにあたり、主にアジアに分布していたと考えられています。
現代の東アジア人のゲノムには、デニソワ人に由来する遺伝子も含まれています。JEWELの解析では、44のアーカイック(旧人類由来)セグメントが複雑形質と関連することが同定されました2。なかでも注目されるのが、NKX6-1遺伝子領域のデニソワ人由来セグメントで、2型糖尿病のリスクと関連が報告されています。これらのセグメントの多くは東アジア人に特異的であり、ヨーロッパ人には見られません。
さらに、Kollerらの研究では、バイオバンク・ジャパンのデータを用いた解析から、東アジア人においてデニソワ人由来の遺伝子座が冠動脈疾患の遺伝率に1.69倍の濃縮を示すことが明らかになっています8。
また、Jacobsらの2019年の研究9は、現代のパプア人が35万年以上前に分岐した2つの異なるデニソワ人系統のDNAを保持し、東アジア人にはさらに第3のデニソワ人系統が存在することを明らかにしました。これは、旧人類と現生人類の接触が従来考えられていたよりもはるかに複雑だったことを示しています。
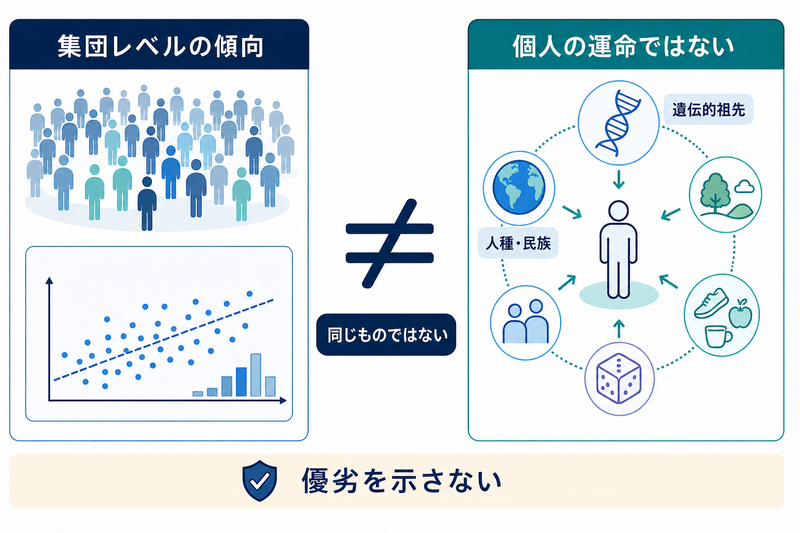
旧人類由来の遺伝子と疾患リスクの関連は、集団レベルの統計的傾向であり、個人の健康リスクを直接予測するものではありません。また、遺伝的な差異は人種や民族の優劣とは一切関係がなく、人類全体の進化の歴史を反映したものです。
Y染色体とミトコンドリアDNAから見る日本人
Y染色体ハプログループDの謎
Y染色体は父から息子にのみ受け継がれるため、男系の系譜を何万年もさかのぼって追跡できます。日本人男性のY染色体は、主に3つの大きなグループに分類されます10。
| ハプログループ | 頻度 | 推定起源 | 拡大時期 |
| D(D-M174) | 約34.7% | アフリカ→南アジア→東アジア | 約2万年前に日本で拡大 |
| O(O-M175) | 約51.8% | 東南アジア→東アジア | 約4,000年前(弥生時代)に拡大 |
| C(C-M130) | 約8.5% | 中央〜北東アジア | 約1.2万年前に拡大 |
特に興味深いのがハプログループDです。この系統は東アジアではチベットと日本に高頻度で見られますが、両者の間の広大な地域ではほとんど検出されません11。Shiらの研究によれば、D-M174は約6万年前にアフリカから出発し、南ルートでユーラシアを東進した最も古い東アジアの現生人類系統のひとつです11。その後、漢文化の新石器時代拡大や最終氷期によって中間地域から駆逐され、チベット高原と日本列島という「避難所」に残されたと推定されています。
日本国内でのハプログループDの分布も特徴的で、アイヌ(約88%)と琉球で高く、本土の中央部(特に近畿地方)で低いU字型分布を示します10,12。一方、弥生系のハプログループOは九州で最も高頻度を示す逆U字型です。これは、弥生人が北九州から列島に入り、東と南に広がったことの遺伝的証拠です。
さらに、アンダマン諸島の先住民(ジャラワ・オンゲ)もハプログループDを持ちますが、日本人のD系統とは約53,000年前に分岐したことがY染色体の系統解析から明らかになっています13。同じ「D」でも、気が遠くなるほど長い時間をかけて独自の進化を遂げてきたのです。
母系から見た日本列島への移住の波
ミトコンドリアDNA(mtDNA)は母から子に受け継がれ、母系の系譜を追跡できます。アイヌの mtDNA解析からは、北方のニヴフ(サハリン)やコリャーク(カムチャッカ半島)との共有型が見つかっており、母系では北方との遺伝的つながりも持つことが示されています12。
北海道のオホーツク文化人のゲノム解析では、アムール川流域、カムチャッカ半島、そして縄文人の3つの祖先成分が混在していることが明らかになりました14,15。約2,000年前にカムチャッカ関連の系統が、約1,600年前にアムール関連の系統が北海道に到達したと推定されており、北方からの移住の波も日本列島の遺伝的多様性に寄与していることがわかります。
遺伝子が語る「日本人」の多様性
アイヌ・琉球・本土 — 周辺と中央の遺伝的勾配
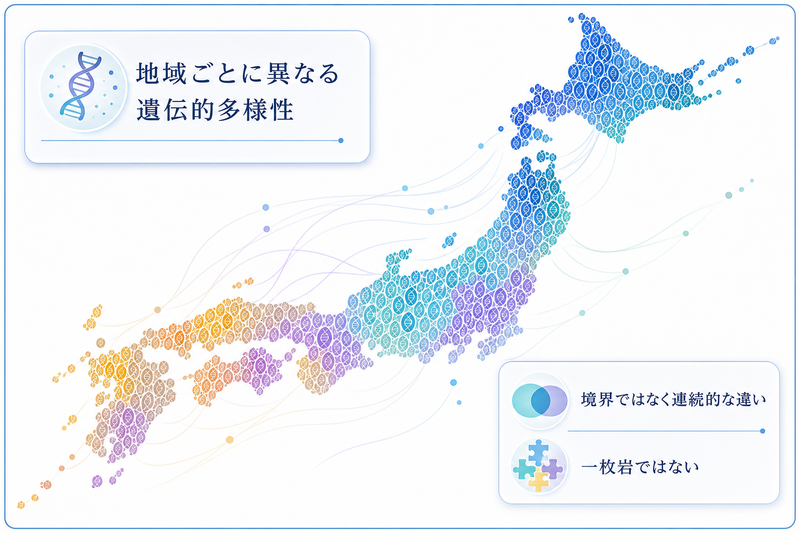
遺伝学的に見ると、日本列島の人々は決して均一ではありません。アイヌと琉球の人々は、列島の北と南という地理的に離れた場所にいながら、遺伝的には互いに比較的近いという特徴を持ちます4,10。これは両者が、縄文人の遺伝的特徴をより多く保持しているためです。
一方、本土日本人(特に近畿・四国地方)は、弥生時代以降の渡来集団の影響を強く受けています。この「周辺(アイヌ・琉球)に縄文成分が多く、中央(近畿)に渡来成分が多い」というパターンは、埴原和郎が形態学的データから予見していた分布と見事に一致します。
ただし、Kawaiらの9,287人の大規模解析16が示すように、遺伝的多様性は単純な「北 vs 南」や「周辺 vs 中央」の図式では捉えきれません。島根県のように、地理的には本土の中央に近くても縄文系の変異を比較的多く保有する地域もあり、山地や海峡による地理的隔離が遺伝構成に複雑な影響を与えています。
遺伝的多様性と「単一民族」という幻想
「日本人は遺伝的に均一な集団である」という考えは、科学的には正しくありません2,16。全ゲノム解析が明らかにしたのは、47都道府県レベルでも検出可能な微細な遺伝的構造の存在です。
また、アルコール代謝に関わるALDH2遺伝子の変異(いわゆる「お酒に弱い体質」)は、東アジア人に特徴的ですが、日本国内でもその頻度には地域差があります。Kawaiらの研究では、アルコール代謝と脂肪酸代謝に関わる遺伝子に正の自然選択の痕跡が見つかっており、農耕の開始に伴う食生活の変化が日本人のゲノムを形作った可能性が示唆されています16。
祖先の遺伝子と現代の私たち
縄文由来遺伝子と体質
大阪大学などの研究グループは、現代日本人のゲノムに含まれる縄文祖先由来の遺伝情報が肥満と関連することを報告しています。これは、狩猟採集生活に適応した縄文人の遺伝子が、現代の飽食環境では異なる影響を持つ可能性を示唆しています。
また、Y染色体ハプログループと出生時の体格に関連があるという報告もあります。Satoの研究では、弥生系のO1b2ハプログループが出生時低身長と、縄文系のD1a2a-12f2bが出生時高体重と有意に関連することが示されました17。
ゲノム医療と集団遺伝学の未来
こうした知見は、ゲノム医療の文脈でも重要です。薬の効き方や病気のリスクは、祖先の遺伝的背景によって異なる場合があります。欧米の研究データをそのまま日本人に適用できない場合があるのはこのためです。
JEWELのような大規模な日本人ゲノムデータベースの整備は、日本人集団に最適化された精密医療(プレシジョン・メディシン)の実現に向けた重要な一歩です。祖先の遺伝的背景を理解することは、過去を知るだけでなく、未来の医療を変える力を持っているのです。
まとめ — 私たちはどこから来て、どこへ向かうのか
- 日本人の起源は「縄文人と弥生人の2層」から「縄文人・弥生人・古墳人の3層」へとモデルが更新された
- 縄文人は2万〜1.5万年前に大陸から分岐し、約1,000人の小集団で1万年以上独自に進化した
- 現代日本人のゲノムには、ネアンデルタール人やデニソワ人など旧人類の痕跡も残っている
- 日本人は遺伝的に均一ではなく、47都道府県レベルで検出可能な地域差がある
- 祖先の遺伝的背景を知ることは、精密医療の実現にもつながる
約6万年前にアフリカを出発したハプログループDの旅、2万年前の海面上昇による島嶼化と縄文人の孤立、3,000年前の弥生時代の大変革、そして古墳時代の第3の波——。私たちのDNAには、この壮大な旅路が今も刻まれています。
遺伝学は、「日本人とは何か」という問いに対して、一つの明確なメッセージを発しています。それは、私たちは多様な起源を持つ混血集団であるということ。そしてその多様性こそが、日本列島で生き延びてきた私たちの強さの源泉なのかもしれません。
よくある質問(FAQ)
Q1: 日本人は「単一民族」ですか?
遺伝学的にはNoです。現代日本人は少なくとも3つの祖先集団(縄文人・弥生時代渡来人・古墳時代渡来人)の混血であり、さらにアイヌ・琉球の人々を含めると遺伝的な多様性は大きいです1,2。全ゲノム解析では、都道府県レベルの微細な遺伝的構造も検出されています。
Q2: 縄文人の遺伝子は現代日本人にどのくらい残っていますか?
本州の日本人では平均約10%が縄文人由来と推定されています。ただし地域差が大きく、沖縄では約28.5%、東北では約19%、近畿・四国では約12%前後です2。
Q3: アイヌ民族と沖縄の人は遺伝的に近いのですか?
はい、比較的近いです。両者とも縄文人の遺伝的特徴をより多く保持しており、本土日本人(特に近畿地方)よりも互いに遺伝的に近いことが複数の研究で確認されています4,10。ただし完全に同じではなく、アイヌはさらに北方(サハリン・カムチャッカ方面)の遺伝的成分も持っています12。
Q4: 弥生人はどこから来たのですか?
遺伝学的証拠から、弥生人は北東アジア(現在の朝鮮半島・中国北部に近い地域)に起源を持つ集団で、水稲農耕とともに約3,000年前に日本列島に渡来しました1,10。
Q5: 遺伝子検査で自分のルーツはわかりますか?
市販のDTC(Direct-to-Consumer)遺伝子検査では、ミトコンドリアDNA(母系)やY染色体(父系)のハプログループを調べることが可能です。ただし、それはあくまでも全ゲノムの一部の情報であり、「何パーセント縄文人」といった精密な推定には全ゲノム解析が必要です。また、結果の解釈には専門知識が必要な場合もあります。
Q6: ネアンデルタール人のDNAは日本人にもありますか?
はい、あります。アフリカ以外の全ての現代人と同様に、日本人のゲノムにも約2%のネアンデルタール人DNAが含まれています。さらに、東アジア人に特有のデニソワ人由来のDNAセグメントも同定されており、一部は2型糖尿病や冠動脈疾患のリスクと関連しています2,8。
