想定読者:免疫の専門家ではない一般内科医。臨床の"納得感"が得られるレベルを目標とした解説です。
📑 目次
要点(まずここだけ)
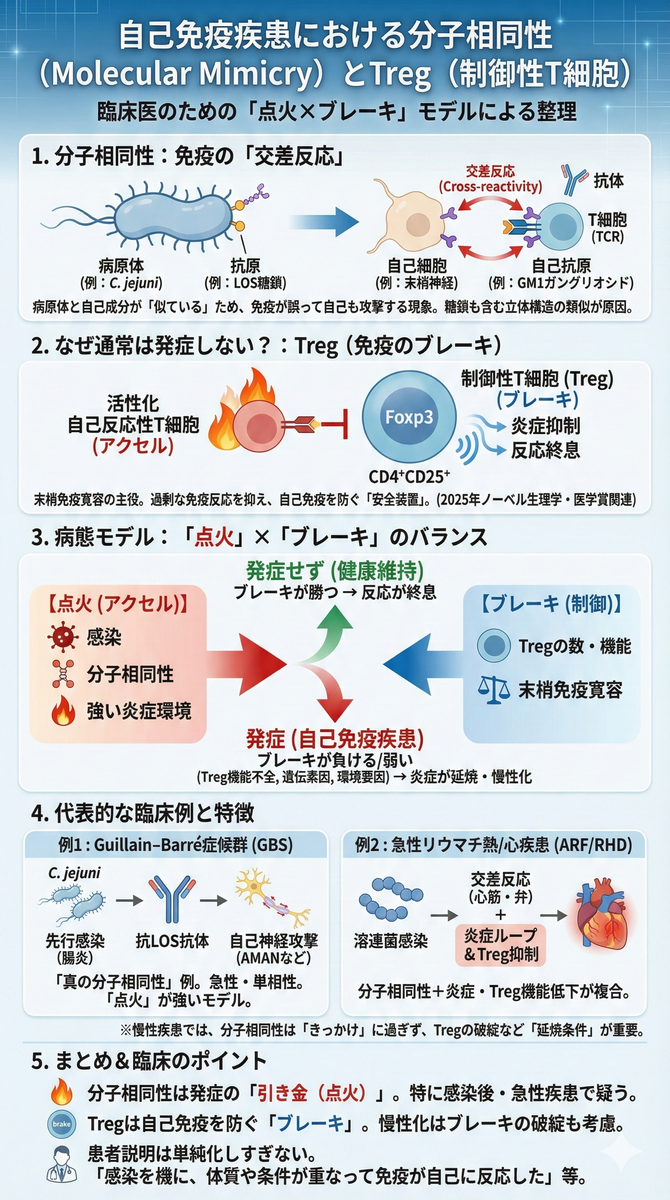
分子相同性(molecular mimicry)とは、病原体に対する免疫反応が、形の似た自己成分にも交差反応してしまう現象で、自己免疫の「引き金」になり得る1。
ただし多くの疾患で、分子相同性は単独原因ではなく、炎症環境・遺伝素因・免疫のブレーキ破綻などと組み合わさって発症に至る1。
制御性T細胞(Treg)は末梢免疫寛容(peripheral tolerance)の中心で、自己免疫を防ぐ「ブレーキ」。Tregが十分に働けば、分子相同性が起きても病気にならないことが多い231。
分子相同性の"教科書級の強い例"としては、Campylobacter jejuni後のGuillain–Barré症候群(特にAMAN)が代表23。
1. 分子相同性とは何か:臨床家向けの定義
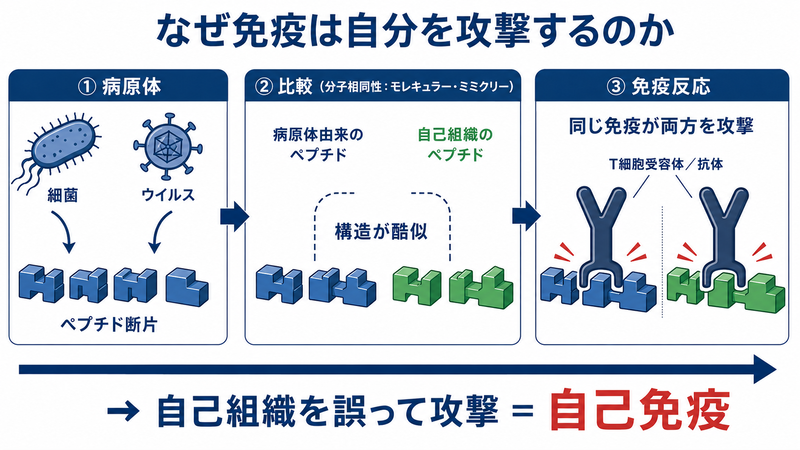
分子相同性(molecular mimicry)は、ざっくり言えば「外敵(病原体)に反応するはずの免疫が、自分の成分にも"似ているから"反応してしまう」という考え方である1。
1) どの免疫が"似ている"と判断するのか
抗体(B細胞):立体構造や糖鎖なども含め、「形」が似ていると結合する。
T細胞:感染細胞などが提示する"短い断片"(ペプチド)を、HLA(MHC)に乗せた形で認識する。
ここで重要なのが、T細胞受容体(TCR)は「鍵と鍵穴」のように完全一致だけを認識するわけではなく、一つのTCRが複数のペプチドを認識し得る(交差反応性が高い)という生物学的特徴である1。これは"免疫が限られた細胞数で多種多様な病原体に対応するための工夫"でもあるが、同時に自己免疫の土台にもなる。
2) 分子相同性は「タンパク」だけではない
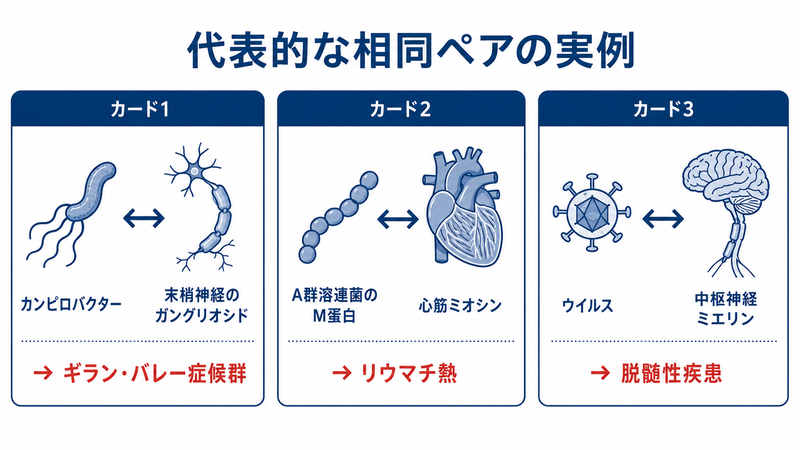
臨床的に非常に分かりやすい例として、GBSでは糖鎖(lipo-oligosaccharide; LOS)が神経のガングリオシド(GM1など)を"まねる"ことで抗体が交差反応し、末梢神経障害を起こし得る3。
2. なぜ自己免疫はふつう起きないのか(Tregの出番)
分子相同性を理解するには、免疫が自己を攻撃しないための「安全装置」を押さえるのが近道である。
1) 自己反応性の芽は、実はゼロにならない
教科書的には、胸腺で自己反応性T細胞が除去される(中枢性免疫寛容)と習うが、これは完全ではない。自己反応性の芽は一定数末梢に出てくる。そこで必要なのが、末梢での追加の制御(末梢免疫寛容)である3。
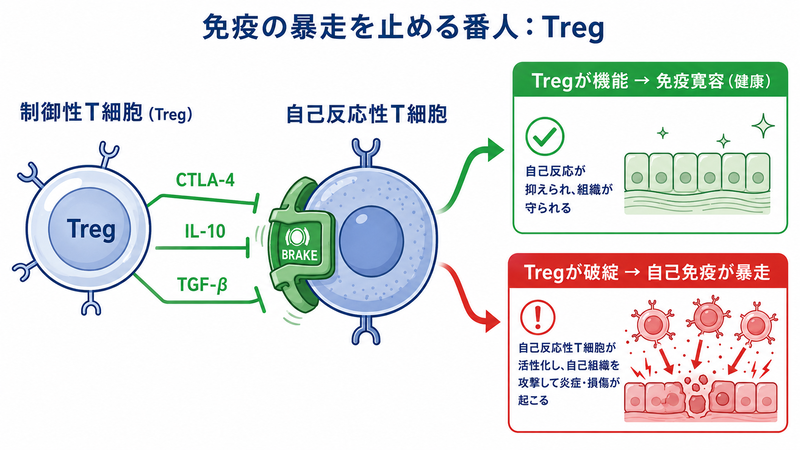
2) 制御性T細胞(Treg)は「末梢免疫寛容の主役」
坂口志文先生らは、CD4+CD25+のT細胞集団が自己免疫を抑えていることを示した。CD25+細胞を除くと、移入されたマウスで多臓器自己免疫が起こり、逆にCD25+細胞を戻すと自己免疫が抑えられる、という非常に分かりやすい実験である2。
さらに、Foxp3遺伝子がTregの発生・機能に重要であること(ヒトではIPEX症候群など)も含め、末梢免疫寛容の概念確立として、2025年ノーベル生理学・医学賞はBrunkow/Ramsdell/Sakaguchiに授与されている(「末梢免疫寛容に関する発見」)3。
3) Tregを"臨床家の言葉"に直すと
Tregは一言でいえば、免疫のブレーキである。
- 自己に向きそうな反応が立ち上がった時に、過剰な炎症を抑える
- 感染防御が終わったあとに、反応を終息させる
- 組織での慢性炎症が続かないようにする
Tregが自己免疫を防ぐのに不可欠である、という点は総説レベルでも一貫して強調されている1。
3. 分子相同性"だけ"では病気になりにくい理由
分子相同性は魅力的な仮説だが、臨床でそのまま当てはめると誤解が生まれる。ポイントは「引き金(点火)」と「病気として成立(延焼)」を分けることである。
Rojasらの総説でも、分子相同性は主要メカニズムの一つとしつつ、それだけが唯一の機序ではなく、他の要素(中枢性寛容の破綻、非特異的なバイスタンダー活性化、持続抗原刺激など)や宿主側要因(遺伝、微生物叢、環境)も絡むと整理されている1。
またウイルスの世界では、宿主分子の模倣は"免疫逃避戦略"として広く見られ、ヒトに感染する多数のウイルスで短い配列レベルの模倣が観察される一方、それが必ず自己免疫に直結するわけではない2。つまり「模倣はありふれているが、発症は条件付き」という見方が自然である。
4. 「分子相同性が原因」と言うための証拠の型
臨床研究で因果を断言しにくいのは当然で、そこで役に立つのが「証拠の型(Evidence pattern)」である。強さの目安としては次の順である。
| 証拠レベル | 内容 |
|---|---|
| 1. 時間関係 | 感染(あるいは曝露)の後に一定の潜伏期間を経て発症 |
| 2. 免疫学的関連 | 病原体に対する抗体/T細胞が、自己抗原にも反応(交差反応) |
| 3. 構造・分子レベル | どの部分(エピトープ)が"似ているか"が示される |
| 4. 動物モデルで再現 | 病原体抗原で免疫すると疾患様病態が起きる |
| 5. 原因部分の欠失で消える | 病原体の"模倣構造"を欠く変異株では自己抗体が誘導されにくい |
GBSではこの「4〜5」に近いレベルまで示された点が、他の自己免疫疾患より際立っている23。
5. 代表例1:Guillain–Barré症候群(C. jejuni関連AMAN)
GBSは「感染後自己免疫」の代表で、分子相同性の議論をするなら避けて通れない。
1) 何が"似ている"のか
| 項目 | 内容 |
|---|---|
| 先行感染 | Campylobacter jejuniが最もよく知られる |
| 自己側標的 | 末梢神経に多いガングリオシド(GM1、GD1aなど) |
| 免疫学 | 抗ガングリオシドIgGがAMANなどと関連 |
| 分子相同性 | C. jejuniのLOS(糖鎖)がGM1などを模倣し得る |
Komagamineらのレビューでも、C. jejuni由来LOSとヒトGM1の糖鎖模倣、さらにその抗原(LOS)やGM1で免疫したウサギでAMANが誘導され、病理がヒトGBSと同様であることが述べられている3。
さらにJCI論文では、C. jejuniのLOSにおけるガングリオシド模倣構造が自己抗体誘導に重要であり、LOSのシアル化に関わる遺伝子ノックアウトで抗ガングリオシド抗体誘導が落ちる、という"原因部分を外すと現象が減る"型の根拠が示されている3。
そして近年の総説でも、C. jejuni後GBSは分子相同性駆動の「真の例(true case)」として位置づけられている2。
2) 病態を臨床家向けに一行で
腸炎 → 抗LOS免疫 → 抗ガングリオシド抗体(交差反応) → Ranvier絞輪周辺などの障害 → 急性単相性の末梢神経障害
3) ではTregはどう関わる?
GBSは多くが単相性で、引き金後に免疫が終息する例が多いという点で、「Tregが効かなくなって慢性化する」型とはやや違う。
ただ臨床的には、感染時の強い炎症環境では一時的に免疫がアクセル優位になり、交差反応クローンが立ち上がりやすくなる。そこから先の反応の収束(自己免疫が続かないこと)には、Tregを含む免疫制御が寄与している、と理解すると一貫する(GBSは"点火"が目立つモデル、慢性自己免疫は"延焼"が目立つモデル、という整理)12。
6. 代表例2:急性リウマチ熱/リウマチ性心疾患(ARF/RHD)
ARF/RHDも古典的な「感染後自己免疫」の枠組みで語られてきた疾患群である。
1) 分子相同性の基本イメージ
| 項目 | 内容 |
|---|---|
| 先行感染 | A群溶連菌(GAS)感染(特に咽頭炎)を繰り返す |
| 自己側標的 | 心筋(心筋ミオシンなど)、弁膜(ラミニンなど)に対する交差反応 |
Nature Reviewsの疾患プライマーでは、GAS抗原と心筋・弁組織の分子の交差反応(例:GASの抗原、心筋ミオシン、弁のラミニンなど)が背景にあること、さらに患者由来のT細胞クローンがヒト心筋ミオシンとGAS Mタンパクの両方に反応する研究などが参照されている1。
Frontiersの2025年ミニレビューも、ARF/RHDはGAS感染で誘発され、分子相同性が重要機序として認識されているとまとめつつ、なお完全な機序解明には課題が残る、というバランスで書いている2。
2) "分子相同性だけでは説明できない"のもARF/RHDの特徴
Frontiersのレビューは、分子相同性以外の機序(免疫の炎症ループ、サイトカイン、組織リモデリングなど)にも触れており、ARF/RHDが単純な一因子モデルではないことが示唆される2。
3) Tregとの接点
同レビューでは、粘膜感染の免疫環境がTh17側に寄り、Tregの増殖・維持が妨げられる可能性にも言及されている。つまり、
- 分子相同性で自己反応が「点火」
- 同時にTreg側の"ブレーキ"が十分に効かない(または局所で負ける)
という二段構えが成立すると、ARF/RHDの"延焼"を説明しやすくなる2。
7. ウイルス・慢性自己免疫疾患における分子相同性
慢性の自己免疫疾患では、分子相同性が「あり得る・関与し得る」ことと、「それが主因である」ことは分けて考える必要がある。
近年の大規模解析では、分子相同性(短い配列レベルの模倣)はウイルス側の戦略として広く見られ、特にヘルペスウイルスなどで目立つこと、またEBV由来の短い模倣配列がMS患者の自己抗体の標的に多い可能性などが示唆されている2。
慢性疾患では以下の理由から、分子相同性"だけ"での説明は困難:
- 潜伏期間が長い
- 途中で標的が変わる/増える("標的の広がり")
- 環境・腸内細菌・治療介入など交絡が多い
複数機序の一部として位置づける方が臨床的には破綻しにくい1。
8. 分子相同性とTregを"同じ地図"で見る:点火×ブレーキモデル
ここからが本稿の核心である。分子相同性とTregは、別々の話ではなく、むしろ同じ病態地図上で最も噛み合う。
1) 病態を2軸で考えると分かりやすい
| 軸 | 役割 | 機序 |
|---|---|---|
| 点火(アクセル) | 免疫反応の惹起 | 感染により、免疫が強く立ち上がる。病原体抗原の中に自己に似た部分があると、交差反応クローンが増える11 |
| ブレーキ(制御) | 免疫反応の抑制 | 自己反応が立ち上がっても、Tregが抑え込んで終息させる(末梢免疫寛容)231 |
同じ"点火"が起きても、ブレーキの強さ(数・機能・局所での優位性)で結果が変わる、という理解である。
2) なぜTregが弱る/負けるのか(臨床家向けに3つ)
| 要因 | 解説 |
|---|---|
| そもそもの素因 | Tregの遺伝的・機能的な弱さ(極端な例がFoxp3異常)3 |
| 炎症環境 | 強い炎症(サイトカイン環境)では、Tregが抑制機能を十分発揮できない、あるいは性質が変わる可能性がある(Tregの可塑性)3 |
| 維持因子の不足 | Tregの恒常性に重要なIL-2シグナルが破綻すると、Tregの数や機能が不十分になり自己免疫に傾く1 |
※ここは治療戦略(低用量IL-2など)にもつながる重要点だが、本稿では"概念"として押さえる程度に留める1。
3) Tregは何をして抑えるのか(最低限だけ)
専門的な分子機構は多岐にわたるが、臨床家としては以下の役割がある、と押さえれば十分である:
- 免疫反応の立ち上がり段階での制動
- 過剰炎症の鎮静化
- 自己反応クローンの拡大阻止
Tregは胸腺由来の集団に加えて末梢で誘導される集団もあり、状況に応じて免疫反応を制御する1。
9. 臨床での"使いどころ":分子相同性を誤用しないコツ
一般内科の現場で分子相同性を扱うときは、以下が実用的である。
1) 「感染→自己免疫」を疑う場面を限定する
- 時間関係が短い(数日〜数週)
- 急性単相性(例:GBS)
- 疾患と先行感染の組み合わせが教科書的
2) 慢性自己免疫では「引き金」より「延焼条件」を見る
慢性疾患で重要なのは、
- 炎症が長引く背景
- 免疫制御の弱さ(Tregの量・質・局所の負け)
- 反応が自己側に固定化していく過程
で、分子相同性は"きっかけ候補"として扱う方が安全である12。
3) 患者説明に使うなら「単純化しすぎない」
「感染が自己免疫を起こした」と断言するより、以下のように説明する方が誤解(ワクチン不安、感染恐怖、過度な因果論)を避けやすい:
- 感染を契機に免疫が強く動いた
- 体質や炎症環境の条件が重なって、自己への反応が出た
- 免疫のブレーキ(Tregなど)の働きも関係する
10. まとめ:分子相同性は「点火」、Tregは「ブレーキ」
分子相同性は、自己免疫疾患の発症に関わり得る重要な概念で、特に感染後自己免疫では説明力が高い12。
ただし多くの自己免疫疾患では、分子相同性は単独原因というより、遺伝素因・炎症環境・免疫制御(Treg)の状況などと組み合わさって発症に至る12。
Tregは末梢免疫寛容の中心で、自己免疫を防ぐ"免疫の安全装置"。分子相同性を臨床で扱うなら、Tregを含めた「点火×ブレーキモデル」で考えると破綻が少ない2313。
❓ よくある質問(FAQ)
Q. 自己免疫疾患における分子相同性(Molecular Mimicry)――制御性T細胞(Treg)まで含めた臨床的整理における最も重要な診断・管理のポイントは何ですか?
A. 専門医による体系的な初期評価と、確立された国内外の最新診療ガイドラインに基づいた早期介入・集学的な管理が極めて重要です。
Q. 日常生活や臨床現場で特に注意すべき注意点は何ですか?
A. 自己判断による薬の中断や治療の遅延を避け、症状変化時には速やかに専門医療機関で再評価を受けることが推奨されます。
